 自云鹏
|
个人信息Personal Information
助理研究员
性别:男
毕业院校:清华大学
学历:博士研究生毕业
学位:理学博士学位
所在单位:数学学院
入职时间:2024-12
学科:基础数学
办公地点:知新楼B809
电子邮箱:
数据的形状:拓扑数据分析(TDA)入门
点击次数:
博客标题:数据的形状:拓扑数据分析(TDA)入门
内容:
数据的形状:拓扑数据分析(TDA)入门
科普随笔 · Popular Mathematics
数据的形状:拓扑数据分析入门
从点云到持续同调——一套用代数拓扑处理数据的数学框架
山东大学数学学院 | 2026 年 8 月 | 阅读约需 10 分钟
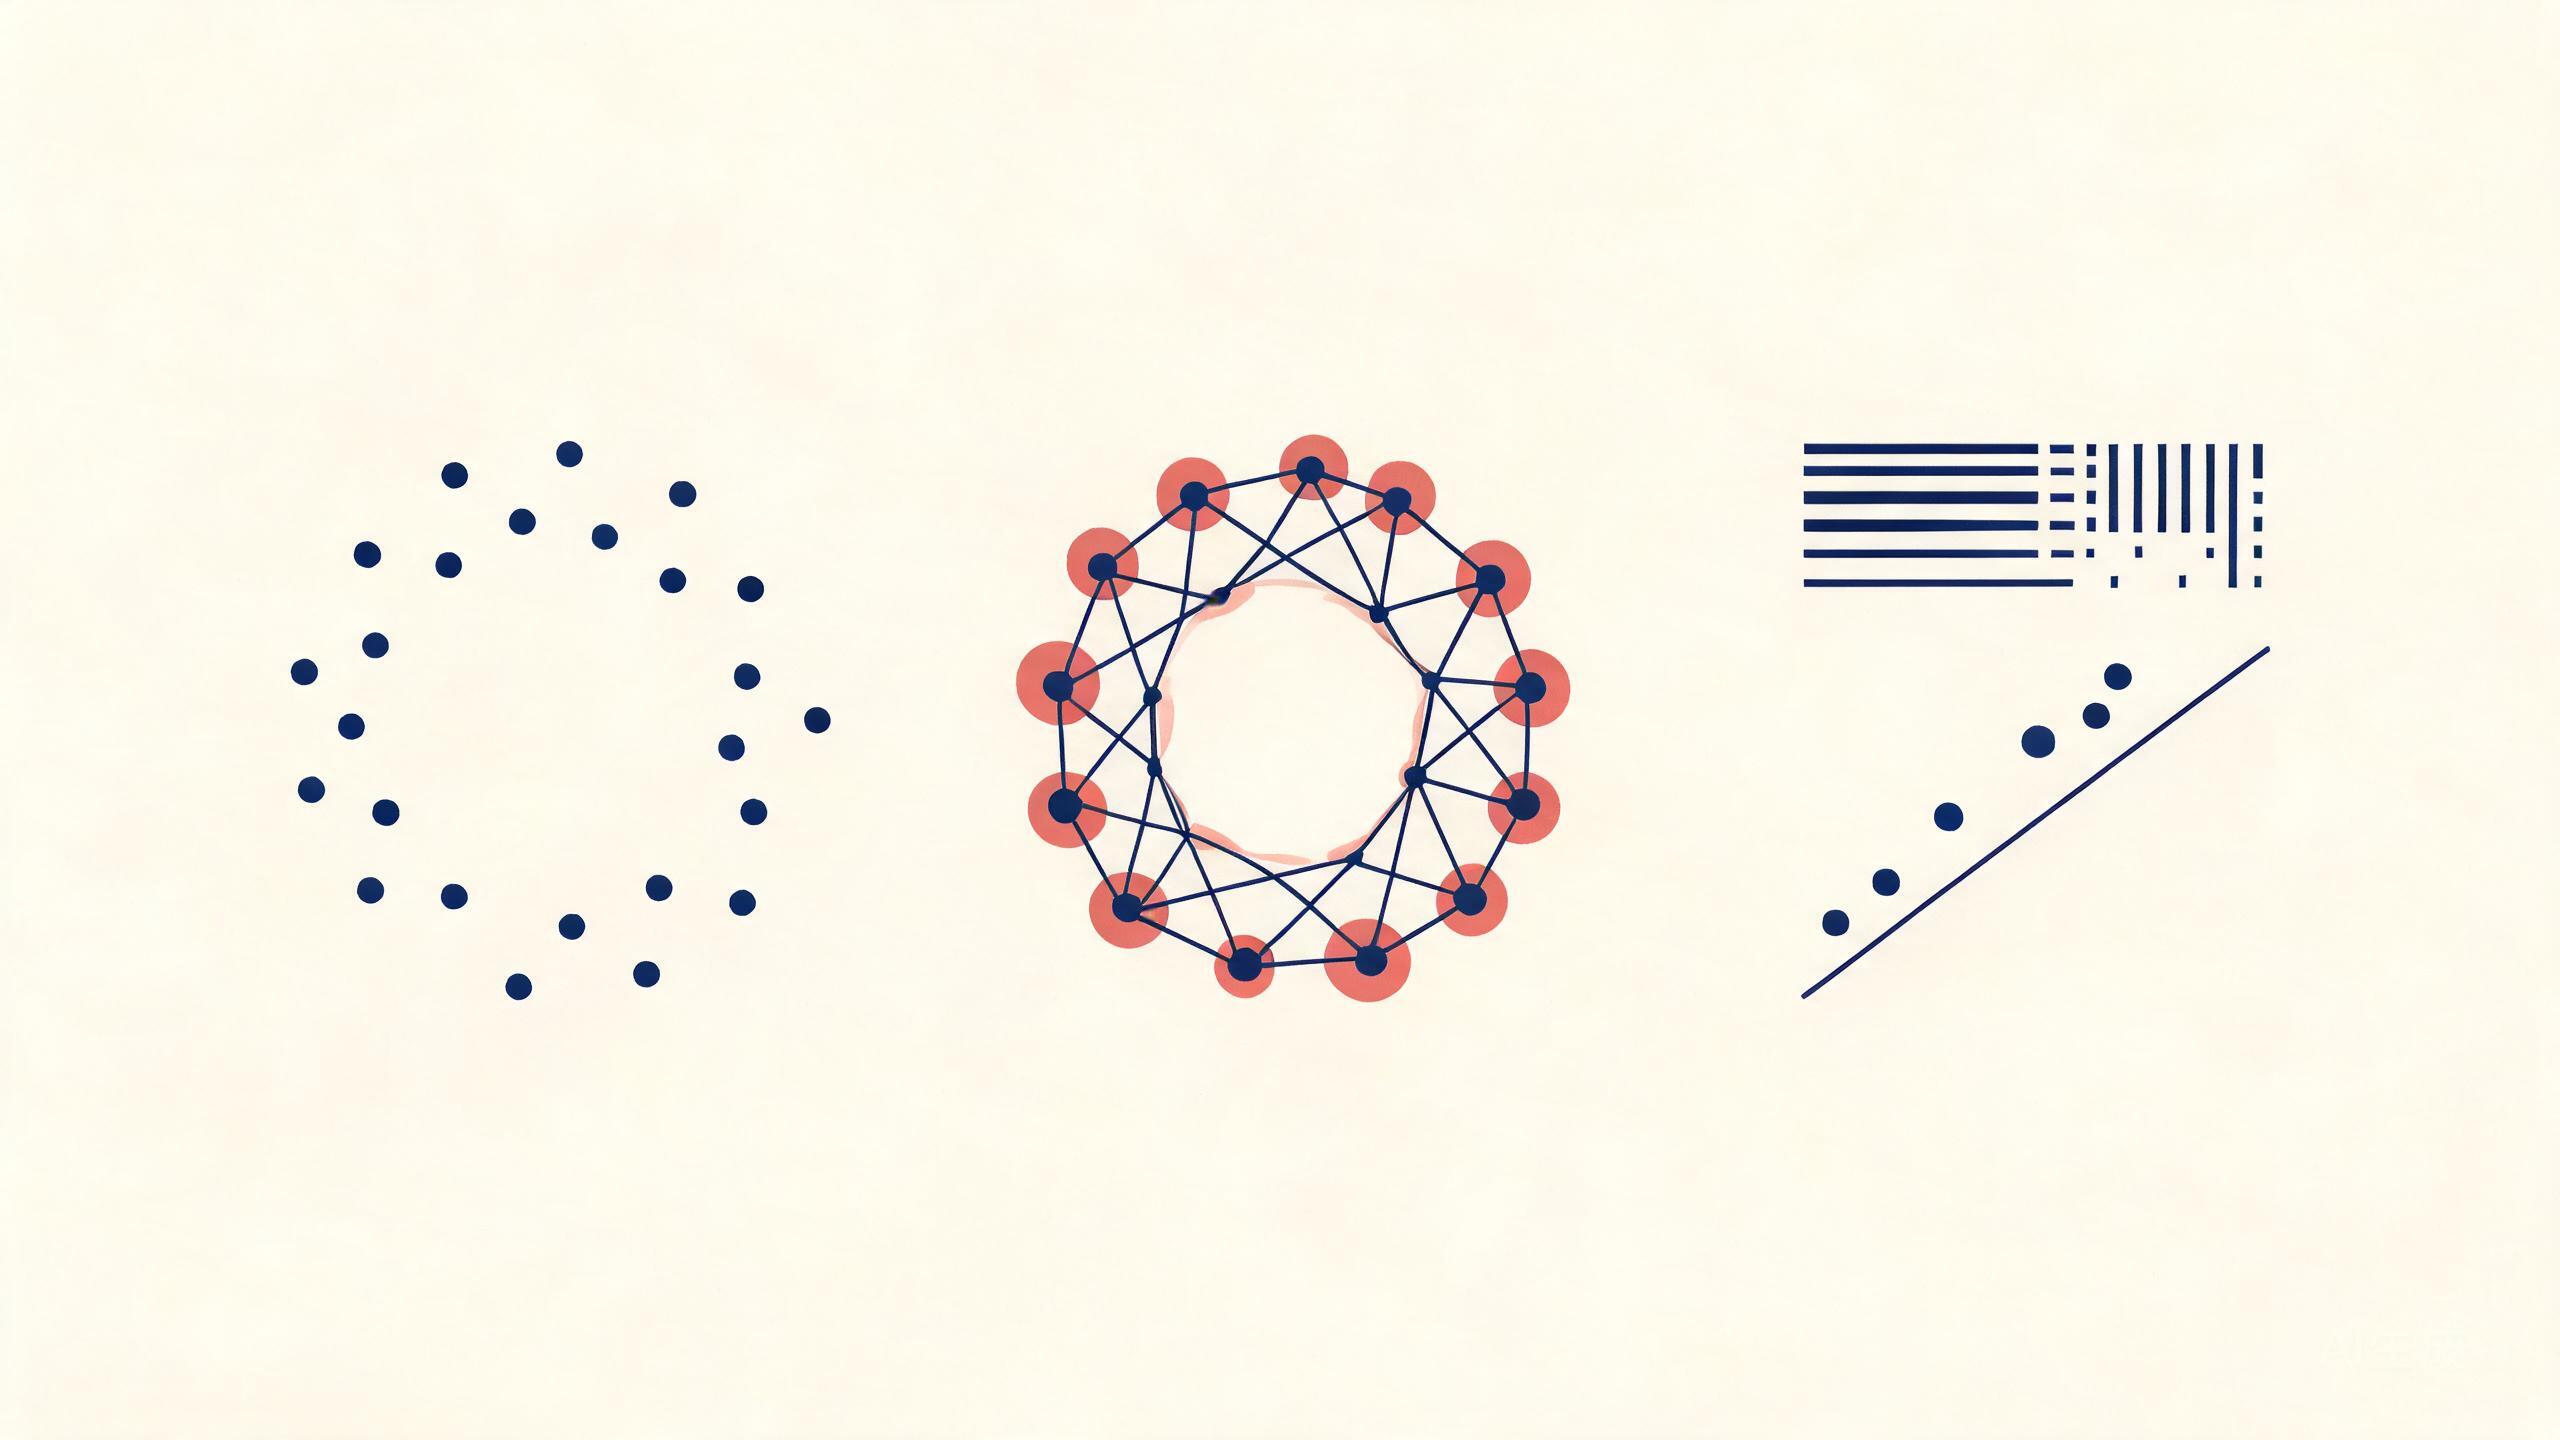
题图:从点云(左)到复形(中),再到持续条码与持续图(右)。(AI 生成示意)
一、为什么关心数据的形状
现代数据很少以整齐的表格形式出现:医学影像是三维体素的阵列,蛋白质结构是空间中的原子坐标,基因表达是数千维向量空间中的样本点。经典的统计方法擅长回答"均值是多少""如何拟合一个低维模型",却不直接回答另一类问题:这组数据在整体上呈什么形状——它有几个连通的分支?中间是否围着一个环?是否包裹着空腔?
拓扑学恰好研究这类问题。拓扑不变量——连通分支数、环的个数、空腔的个数——在连续变形下保持不变,因此不依赖坐标的选取,对旋转、平移、伸缩乃至一定程度的噪声扰动都不敏感。拓扑数据分析(Topological Data Analysis, TDA)的基本思想是:把有限的数据集与一族拓扑空间联系起来,用代数拓扑的工具计算这些不变量,并追踪它们随尺度的演化。这一框架在 2000 年前后由 Edelsbrunner 学派提出的持续同调理论与 Carlsson 学派倡导的数据拓扑方法共同奠定[2][3][5],如今已成为应用拓扑中最活跃的方向之一[1]。
本文面向具有基本数学素养的读者,介绍 TDA 的核心构造:从点云到单纯复形,从同调群到持续同调与条码,再到使这一切可用于真实数据的稳定性定理,最后介绍它在医学影像、蛋白质结构与神经科学等领域的若干代表性研究。
二、第一步:把点云变成复形
数据本身只是有限个点,没有任何"形状"可言。要谈论形状,首先要用点构造出空间。合适的载体是单纯复形——由顶点、边、三角形、四面体等按规则粘合而成的组合对象。
定义 1 · 抽象单纯复形
设 V 为有限集。V 的子集族 K 称为抽象单纯复形,若 σ ∈ K 且 τ ⊆ σ 蕴含 τ ∈ K。K 中的元素称为单形;含 k+1 个元素的单形称为 k-维单形(0-维为顶点,1-维为边,2-维为三角形,3-维为四面体)。
给定度量空间中的有限点集 X 和尺度参数 r > 0,有两种标准的构造方式。记 B(x,r) 为以 x 为中心、半径 r 的闭球。
定义 2 · Čech 复形与 Vietoris–Rips 复形
Čech 复形:Č(X;r) = { σ ⊆ X : ⋂x∈σ B(x,r) ≠ ∅ },即一组球有公共交点时记入一个单形。
Vietoris–Rips 复形:VR(X;r) = { σ ⊆ X : d(x,y) ≤ 2r, ∀ x,y ∈ σ },即两两距离都不超过 2r 时记入一个单形。
Čech 复形的理论性质由经典的 Nerve 定理保证:
定理 · Nerve 定理
有限个闭凸集(特别地,欧氏空间中的闭球)的 nerve 复形与其并集同伦等价。因此 Č(X;r) 与球并 ⋃x∈X B(x,r) 具有相同的同调。
换言之,Čech 复形忠实地记录了"以半径 r 膨胀后的点云"的拓扑。两种复形之间有交错包含关系 Č(X;r) ⊆ VR(X;r) ⊆ Č(X;√2r),说明它们在多尺度意义下携带同阶的信息。实践中更常用 VR 复形,原因是:它的构造只需要点与点之间的距离矩阵,不需要任何坐标。这使它可以直接用于任意高维的数据,甚至只定义了距离的抽象数据集。
r₁ → 0β₀ = 10→r₂β₀ = 1, β₁ = 1→r₃β₀ = 1, β₁ = 1→r₄β₀ = 1, β₁ = 0图 1 · Vietoris–Rips 滤链示意(r₁ < r₂ < r₃ < r₄):随半径增大,相交的球对给出边,两两相交的三点给出三角形。环状点云在 r₂ 时围出一个洞(β₁ = 1),该洞保持到 r₃,最终在 r₄ 被填满。
三、同调群:用代数记录洞
复形本身仍然是组合对象,我们需要从中提取可计算的不变量。同调群正是为此设计的代数机器。对复形 K,取系数在 ℤ/2 中的链群 Ck——以全体 k-单形为基底的向量空间;边界算子 ∂k : Ck → Ck−1 把每个 k-单形映到它的全体 (k−1)-维面之和。直接验证给出基本事实 ∂k−1 ∘ ∂k = 0,即"边界的边界为零"。于是闭链群 Zk = ker ∂k 包含边缘群 Bk = im ∂k+1,商空间
Hk(K; ℤ/2) = Zk / Bk
称为第 k 个同调群:闭链中"本身不是任何东西的边界"的那些,恰好对应复形中的洞。取 ℤ/2 系数的原因是技术上的:此时 1+1=0,边界不涉及符号与定向问题,全部计算归结为 ℤ/2 上的矩阵消元,而对绝大多数数据分析目的而言信息量已经足够。
同调群的维数 βk = dim Hk 称为 Betti 数,其含义是具体的:β₀ 是连通分支的个数,β₁ 是独立的一维环的个数,β₂ 是封闭空腔的个数。
| 空间 | β₀(分支) | β₁(环) | β₂(空腔) |
|---|---|---|---|
| 圆周 S¹ | 1 | 1 | 0 |
| 球面 S² | 1 | 0 | 1 |
| 环面 T² | 1 | 2 | 1 |
| 双环面(亏格 2 曲面) | 1 | 4 | 1 |
这里有一个明显的困难:固定尺度 r 下的同调强烈依赖于 r 的选取。r 太小,点云碎成一堆互不相连的点;r 太大,所有球连成一团,什么结构也没有。图 1 已经显示了这一点:环只在 r₂ 到 r₄ 之间存在。那么"正确"的 r 是多少?TDA 的回答是:不做选择,把所有尺度一起考虑。这正是下一节的内容。
四、持续同调:记录每个特征的生与死
当 r₁ < r₂ 时 VR(X;r₁) ⊆ VR(X;r₂)。让 r 从小到大取遍所有临界值,得到一列递增的复形 K₁ ⊆ K₂ ⊆ ⋯ ⊆ Km,称为滤链(filtration)。包含映射诱导出同调群之间的线性映射 Hk(Ki) → Hk(Kj);这族向量空间连同这些映射,称为一个持续模(persistence module)。
在这样的序列中,每个同调类都有明确的"生平":它在某个尺度首次出现(出生 b),又在某个更大的尺度被填入的单形杀死(死亡 d)。例如图 1 中,环在 r₂ 出生、在 r₄ 死亡。每个类因此携带一个区间 [b, d)。下面的结构定理保证了:知道所有区间,就等于知道整个持续模。
定理 · 持续模的结构定理
域上满足点态有限维条件的持续模 M 同构于一族区间模的直和 M ≅ ⊕j I[bj, dj),且该分解在同构意义下唯一。[3]
因此区间族本身——持续条码(barcode)——是持续模的完全不变量。把每个区间画成平面上的点 (b, d),得到的点集称为持续图(persistence diagram)。
H₀H₁∞0123尺度参数 r(球的半径)图 2 · 与图 1 对应的持续条码(示意):H₀ 的九个短区间对应很快被合并掉的连通分支,只剩一支长区间存活到任意大尺度;H₁ 中唯一的长区间对应点云围出的环,短区间为噪声。出生 b死亡 d靠近对角线:噪声远离对角线:信号(环)图 3 · 持续图(示意):条码中的每个区间 [b, d) 对应点 (b, d),恒位于对角线上方;与对角线的垂直距离正比于寿命 d − b。
条码与持续图给出了一个拓扑意义下的信噪判据:长寿的区间(远离对角线的点)是数据的稳健拓扑特征,短寿的区间(贴在对角线附近的点)通常来自采样噪声。在图 1–3 的例子中,无需任何先验知识,算法自动报告:这组数据有一个连通分支和一个环——这正是我们肉眼看到的形状。值得指出的是,条码的框架还允许自然的推广:当特征在演化过程中可以出现—消失—再出现(例如时间序列数据),可以允许滤链中的箭头反向,得到 zigzag persistence 的理论[8]。
五、稳定性定理:为什么这套方法可靠
把 TDA 用于实验数据前必须回答一个问题:如果数据有噪声,输出的条码会不会完全改变?答案由稳定性定理给出。首先需要度量两个持续图之间的距离。
定义 · Bottleneck 距离
设 D, D′ 为两个持续图。其 bottleneck 距离为 dB(D, D′) = infη supx ‖x − η(x)‖∞,其中 η 取遍两图之间的所有双射匹配,并允许把点匹配到对角线(即允许"删除"短区间)。
定理 · 稳定性定理(Cohen-Steiner–Edelsbrunner–Harer, 2007)
设 X 为可三角剖分的空间,f, g : X → ℝ 为两个 tame 函数。则对任意维数 k,由子水平集滤链所得的持续图满足
dB(Dgmk(f), Dgmk(g)) ≤ ‖f − g‖∞。[4]
对点云也有平行结论:若两个有限点集的 Gromov–Hausdorff 距离为 ε,则它们 VR 滤链所得持续图的 bottleneck 距离不超过 2ε。这些结果的含义是明确的:数据的小扰动只引起输出特征的小扰动——TDA 特征在噪声意义下是李普希茨连续的。这是持续同调能够从纯数学走进实验科学的根本原因,也是它区别于许多启发式"形状描述子"的理论优势。
六、Mapper:把数据压缩成一张图
持续同调之外,TDA 的另一支柱是 Mapper 算法[6],它把高维数据压缩成一个可读的一维骨架图。输入有三样:数据集 X、一个连续实值函数 f : X → ℝ(滤波函数,可按问题选取,如密度、离心度或任意特征)、以及值域的一个开覆盖 {Uα}。算法分两步:把每个原像 f−1(Uα) 中的点聚类成若干簇;然后以所有簇为顶点、以簇之间的非空交为单形,取该覆盖的 nerve。输出的图中,顶点代表数据中"局部相似"的群体,边代表群体之间的过渡。
Mapper 最有影响的早期应用来自生物医学:Nicolau、Levine 与 Carlsson 用它分析乳腺癌患者的基因表达数据,从中自动分离出一类具有独特突变谱、且预后显著优于其余患者的亚型[7]——这类结构在传统的聚类与降维方法中并不明显。Mapper 与持续同调是互补的:前者给出全局结构的压缩可视化,后者给出多尺度的定量不变量;当然,Mapper 的输出依赖滤波函数与覆盖的选择,结论需要对参数做稳健性检验。
七、代表性研究案例
7.1 医学影像:从血管形态到肿瘤预后
三维医学影像(CT、MRI)本身就是定义在规则体素网格上的函数,因而是持续同调的天然输入:取灰度值(或分割概率)的子水平集,让阈值从小到大变化,即得一个滤链;用立方复形(cubical complex)可以直接在体素网格上计算三维持续同调,其中 β₀ 计数独立的病灶块、β₁ 计数环状结构、β₂ 计数封闭空腔。这类拓扑量与大小、边界等几何量是正交的信息。以下几项研究展示了这一思路的不同侧面。
Bendich、Marron 等人将脑部动脉树视为三维曲线结构,用持续同调量化血管的分支与弯曲模式,刻画出脑血管形态随年龄增长的系统性变化[10]。Crawford 等人对胶质母细胞瘤患者的 MRI 提取持续同调特征,并结合函数型数据分析预测患者生存期,精度优于仅使用肿瘤体积等常规量的模型[11]。Lawson 等人则在前列腺癌的组织病理切片中用持续同调量化腺体结构的形态差异,为 Gleason 分级的自动评估提供了新的特征[12]。这些工作共同说明:由稳定性定理保证稳健的拓扑特征,可以直接进入临床相关的统计模型。
7.2 蛋白质结构:折叠、柔性与力学响应
蛋白质的 Cα 骨架是空间中的有序点云,其整体折叠与缠绕模式正是同调方法的作用对象。Xia 与 Wei 系统地将持续同调引入蛋白质结构分析:由原子坐标随尺度增长生成的滤链所得到的 Betti 曲线,既能预测刻画原子热涨落的 B 因子,也能追踪折叠过程中拓扑事件的发生次序[13]。Gameiro、Hiraoka 等人则用持续同调定义了蛋白质的"拓扑可压缩性"——比较加压前后持续图的变化,即给出力学响应的定量度量,其结果与实验测得的可压缩性相符[14]。与基于局部几何量(曲率、二面角)的描述相比,拓扑特征刻画的是连接方式本身,因而对构象的连续形变不敏感。
7.3 神经科学、材料与单细胞组学
在神经科学中,Giusti、Pastalkova、Curto 与 Itskov 从海马体位置细胞发放的相关矩阵出发构造团复形(clique complex),其持续同调揭示出动物所处物理空间的几何结构被编码在神经活动的拓扑之中[15]。在材料科学中,Hiraoka 等人对非晶氧化物的原子构型计算持续同调,识别出常规衍射方法难以刻画的环状分层结构,并建立了这些结构与玻璃力学性质的联系[16]。在单细胞组学中,Rizvi 等人将 Mapper 用于单细胞 RNA 测序数据,从数千个细胞中重建出胚胎发育与细胞分化的连续轨迹[17]。更多方向(传感器网络覆盖、宇宙大尺度结构等)可参见综述[1]。
八、计算与工具
持续同调的计算归结为带 ℤ/2 系数的边界矩阵按滤链顺序做列约化,最坏复杂度为 O(m³)(m 为单形总数);实践中配合 clearing、twist、上同调对偶等优化,常见数据的运行时间常接近线性[9]。成熟的开源实现已经形成稳定的生态:
| 软件 | 语言 / 接口 | 特点 |
|---|---|---|
| Ripser | C++ / Python | VR 复形计算极快,适合大规模点云 |
| GUDHI | C++ / Python | 复形类型齐全,含 cubical complex,适合体素图像 |
| Dionysus 2 | C++ / Python | 支持 zigzag persistence 等推广 |
| giotto-tda | Python | 与 scikit-learn 生态衔接,向量化工具完整 |
需要注意的是,条码本身不是向量,不能直接喂给机器学习模型。标准的做法是先把它嵌入到函数空间:Betti 曲线记录每个尺度上存活的类数,persistence landscape 与 persistence image 把持续图变成可积函数或图像,之后便可接任意分类器与统计检验。
这一领域仍有大量开放问题:多参数持续同调(同时沿密度与尺度两个方向变化)不存在区间式的完全不变量;zigzag 与时空数据的理论正在向流形学习与动力学延伸;持续同调与深度学习的可微结合也在快速发展。对代数拓扑学者而言,这里是理论与计算接口处一片仍在快速生长的领域。
九、结语
回顾全文,TDA 的贡献可以归结为三点。其一,它提供了坐标无关的整体特征:同调量不依赖数据所在的嵌入空间与坐标选取。其二,持续同调把"尺度该如何选取"这一困境转化为一个可计算对象——所有尺度上每个特征的寿命,并用条码与持续图把它表示出来。其三,稳定性定理保证这些特征对噪声连续,使方法有资格进入实验科学。
对数据科学的工作者而言,TDA 不是统计方法的替代品,而是一组正交的补充工具:当问题关心的是连通性、环、空腔这类整体结构时,它给出的答案既精确又有定理保证。对数学背景的读者而言,这个领域还有一层额外的吸引力:拓扑学中最抽象的概念——同调、滤链、模的分解——在这里直接变成了可以在笔记本电脑上运行的算法。
※参考文献
Carlsson, G. Topology and data.Bulletin of the American Mathematical Society(N.S.) 46(2), 255–308 (2009).
Edelsbrunner, H., Letscher, D., Zomorodian, A. Topological persistence and simplification.Discrete & Computational Geometry28(4), 511–533 (2002).
Zomorodian, A., Carlsson, G. Computing persistent homology.Discrete & Computational Geometry33(2), 249–274 (2005).
Cohen-Steiner, D., Edelsbrunner, H., Harer, J. Stability of persistence diagrams.Discrete & Computational Geometry37(1), 103–120 (2007).
Ghrist, R. Barcodes: the persistent topology of data.Bulletin of the American Mathematical Society(N.S.) 45(1), 61–75 (2008).
Singh, G., Mémoli, F., Carlsson, G. Topological methods for the analysis of high dimensional data sets and 3D object recognition. InEurographics Symposium on Point-Based Graphics, 91–100 (2007).
Nicolau, M., Levine, A. J., Carlsson, G. Topology based data analysis identifies a subgroup of breast cancers with a unique mutational profile and excellent survival.Proceedings of the National Academy of Sciences USA108(17), 7265–7270 (2011).
Carlsson, G., de Silva, V. Zigzag persistence.Foundations of Computational Mathematics10(4), 367–405 (2010).
Otter, N., Porter, M. A., Tillmann, U., Grindrod, P., Harrington, H. A. A roadmap for the computation of persistent homology.EPJ Data Science6, 17 (2017).
Bendich, P., Marron, J. S., Miller, E., Pieloch, A., Skwerer, S. Persistent homology analysis of brain artery trees.Annals of Applied Statistics10(1), 198–218 (2016).
Crawford, L., Monod, A., Chen, A. X., Mukherjee, S., Rabadán, R. Predicting clinical outcomes in glioblastoma: an application of topological and functional data analysis.Journal of the American Statistical Association115(531), 1139–1150 (2020).
Lawson, P., Schupbach, J., Fasy, B. T., et al. Persistent homology for the quantitative evaluation of architectural features in prostate cancer histology.Scientific Reports9, 1139 (2019).
Xia, K., Wei, G.-W. Persistent homology analysis of protein structure, flexibility, and folding.International Journal for Numerical Methods in Biomedical Engineering30(8), 814–844 (2014).
Gameiro, M., Hiraoka, Y., Izumi, S., Kramar, M., Mischaikow, K., Nanda, V. A topological measurement of protein compressibility.Japan Journal of Industrial and Applied Mathematics32(1), 1–17 (2015).
Giusti, C., Pastalkova, E., Curto, C., Itskov, V. Clique topology reveals intrinsic geometric structure in neural correlations.Proceedings of the National Academy of Sciences USA112(44), 13455–13460 (2015).
Hiraoka, Y., Nakamura, T., Hirata, A., Escolar, E. G., Matsue, K., Nishiura, Y. Hierarchical structures of amorphous solids characterized by persistent homology.Proceedings of the National Academy of Sciences USA113(26), 7035–7040 (2016).
Rizvi, A. H., Camara, P. G., Kandror, E. K., Roberts, T. J., Schieren, I., Maniatis, T., Rabadán, R. Single-cell topological RNA-seq analysis reveals insights into cellular differentiation and development.Nature Biotechnology35(6), 551–560 (2017).
说明:图 1–图 3 为手绘 SVG 示意图,条码与坐标仅为演示数值关系;题图由 AI 生成。本文首发于个人主页,转载请注明出处。
发布时间:2026-08-28